|
|
Эволюционная роль половых хромосом. (Новая концепция)
В.А. Геодакян
(Опубликовано в журнале "Генетика", 1998, т. 34, №
8, с. 1171-1184)
“Представляется, что человеческий разум должен свободно
строить формы, прежде чем подтвердится их реальное существование...
Из голой эмпирии не может расцветать познание. Такой расцвет возможен
только из сравнения придумываемого и наблюдаемого”.
Альберт Эйнштейн2
“Одной из основных задач теоретического исследования
в любой области знания является установление такой точки зрения,
с которой объект исследования проявляется с максимальной простотой”.
Виллард Гиббс3
Половая дифференциация позволяет эволюционные новации
проверять в мужском геноме, прежде чем передавать их в женский.
Это возможно при дихронной (асинхронной) эволюции, когда эволюция
мужского пола предшествует эволюции женского4.
Значит, наряду с локализованными в аутосомах общими генами стабильных
признаков, должны существовать сугубо мужские, уже попавшие в мужской
геном, но еще не попавшие в женский, и сугубо женские, уже утраченные
мужским полом, но еще остающиеся у женского, составляющие временный
эволюционный ГПД5.
По общим же генам не может быть ГПД, они образуют только постоянный
ФПД (гормональный). Такая трактовка ГПД, как следствия полового
дихронизма, позволяет выявить эволюционные роли ПХ и предложить
для них новую концепцию, согласно которой Y-хр - “ворота” для экологической
информации в геном, место “рождения” и апробации новых генов, инициатор,
акселератор и регулятор ГПД, Х-хр гетерогаметного пола - “транспортная”,
переносит новые гены из Y-хр в А-, является стабилизатором, релаксатором
и ликвидатором ГПД, а также хранилищем отработавших, ожидающих элиминацию
генов. Концепция дает новый подход к пониманию многих явлений: появлению,
локализации и переходам генов по хромосомам и между ними, инактивации
хромосом, мобильных генов, “вспышек” мутаций, инсерционного мутагенеза,
связи Y-хр со стрессом, ретровирусами и др. В частности, позволяет
объяснить куда и зачем “прыгают” гены, почему транспозиции мобильных
элементов зависят от экологического стресса, почему мутируют одновременно
разные гены и т.д.6
ВВЕДЕНИЕ
Со времени открытия ПХ7,
считается, что их основная роль - определение пола и обеспечение
СП 1:1. А так ли это? Конечно, ПХ делают и то и другое, но можно
ли на этом основании считать, что в этом их главное функциональное
значение? Ведь для определения пола вполне достаточно одного А-гена-триггера,
а СП 1:1 автоматически получается при скрещивании рецессивной гомозиготы
с гетерозиготой. Ведь пол существовал и до появления ПХ и многие
современные РП виды не имеют ПХ. Тогда не ясен эволюционный смысл
(роль, целесообразность, назначение) аутосомно-гоносомной ДИФ. Какой
принцип лежит в ее основе? Что дают разные алгоритмы поведения хромосом?
Почему А- передаются от родителей к потомству чисто стохастически,
случайно, а ПХ - по особым маршрутам: Y-хр от отца - только сыну,
Х-хр - только дочери? Какие гены локализованы в А-, какие - в Х-хр,
какие - в Y-? Как можно объяснить особенности конъюгации,
кроссинговера или конденсации ПХ в зависимости от пола и типа гаметности?
Мы много знаем о работе генов в хромосомах в онтогенезе, но
почти ничего не знаем об их “образе жизни” в геноме в филогенезе.
Ведут ли они себя “оседло”: “рождаются”, “живут”, работают и “умирают”
в одной хромосоме или - “кочуют”: разные фазы своего филогенеза
проводят в разных хромосомах? Существует ли закономерный “маршрут”
генов по хромосомам? Если да, то какой?
Накопилось много загадок, противоречий и просто новых
данных, которых классическая теория ПХ не может объяснить. Скажем,
трактовка телец Барра как компенсации дозы Х-генов. Если конденсация
действительно была бы для этого, то тельца Барра должны были в норме
образоваться всегда у гомогаметного пола. Однако у птиц так же,
как у млекопитающих, конденсируется Х-хр самок (причем единственная!).
Какая же это компенсация дозы? У птиц же отсутствует конъюгация
ПХ. Почему-то репликация ДНК одной Х-хр у гомогаметного пола и Y-
хр происходит после окончания репликации аутосом8,
и т.д.
Очень загадочна Y-хромосома. Это самая вариабельная,
особенно по длине, хромосома генома, богатая нуклеотидными повторами
и гетерохроматином у животных, и эухроматином и разбросанными
по всем хромосомам повторами - у растений9.
У человека она генетически почти пустая (если не считать генов волосатости
ушей и перепонок между пальцами ног). У других видов может содержать
много активных генов. Например, у дрозофилы известно много генов,
локализованных внутри Y-гетерохроматина. У гуппи еще в 20-30гг были
открыты свыше 30 Y-генов окраски самцов (и только один А- ген!),
часть из них участвует в неравном кроссинговере с Х-хр, при этом,
переход Y–Х в 4 раза чаще, чем обратный10.
На стрекозах было показано, что форма ХY эволюционно более
поздняя, чем Х0. Однако есть и противоположная точка зрения, согласно
которой, ПХ произошли из обычной пары А-, несущей определяющие пол
гены, поэтому у одних видов (более примитивных) Y-хр такая же по
размерам как Х-хр, конъюгирует с ней полностью или частично и участвует
в кроссинговере. У других видов (более прогрессивных) - она маленькая,
с Х-хр соединяется конец в конец, без кроссинговера. В процессе
эволюции Y-хр почему-то теряет свои активные гены, деградирует и
исчезает. Поэтому форма ХY предшествует Х011.
Этот вопрос остается пока открытым. Только в одном трудно согласиться
с автором, что ярко-красное пятно самцов гуппи раньше было
и у самок, которые его потом утратили. Думаю, оно никогда не было
у самок. Были сообщения о более крупной Y-хр у разных этнических,
или социальных групп, о большой дисперсии ее у грызунов, обитающих
в зонах повышенной сейсмической активности12,
о связи с ретровирусами13,
с новыми мутациями14,
и т.д.
Создается впечатление, что с ПХ, и прежде всего с Y-хр,
мы чего-то существенного не понимаем. А не понимаем главного - для
чего ПХ? Что они делают? Каково их назначение, функциональная роль
и адаптивное значение? В чем их эволюционный смысл, логика? В настоящей
статье предлагается новая концепция ПХ, отвечающая на эти
вопросы, модель, основанная на идее дихронной эволюции. Но прежде,
необходимо ответить на другой, более фундаментальный, вопрос - “для
чего пол?”
ПРОБЛЕМА ПОЛА
На протяжении полутора веков пол остается центральной
проблемой эволюционной биологии. Ею занимались крупнейшие биологи
19-20 вв. - Дарвин, Уоллес, Вейсман, Гольдшмидт, Фишер, Мёллер.
И несмотря на это современные авторитеты продолжают писать в связи
с полом о “кризисе” в эволюционной биологии. За последние 20 лет
проблема пола переживает очередной ренессанс. Появилась дюжина книг,
в заглавии которых фигурируют два слова: “пол” и “эволюция”15.
Одна из них начинается с фразы: “Преобладание полового размножения
у высших растений и животных несовместимо с современной эволюционной
теорией”16. В другой
- читаем: “Мы не имеем удовлетворительного объяснения тому, как
возник и как сохраняется пол”17.
В третьей монографии, посвященной эволюции и генетике пола, автор
пишет: “Проблема пола - главный вызов современной теории эволюции...
Царица проблем... Интуиции Дарвина и Менделя, осветившие так
много загадок, не смогли справиться с центральной загадкой
полового размножения.”18.
Еще один крупнейший авторитет по проблеме пола пишет: “Довольно
поразительно, но ученые не могут убедительно сказать, зачем существует
пол.”19. На эту
тему появляется много статей и обзоров. По крайней мере, два ведущих
генетических журнала посвятили этой проблеме в 1993-94 гг.
специальные выпуски20.
Все это говорит о том, что центральная проблема эволюционной биологии
и генетики - проблема пола - за рубежом остается все еще нерешенной,
и на главный вопрос: для чего пол, какое имеет адаптивное значение,
ответа пока нет21.
То, что у эволюционной теории в вопросах пола концы
не сходятся с концами мне стало ясно в начале 60 гг. Впервые эвристическое
решение проблемы пола было опубликовано мной в 1965 г. в небиологическом
журнале22.
В чем суть проблемы
и почему ее не могут решить?
Самой фундаментальной программой жизни является программа
репродукции, лежащая в основе таких биологических явлений, как репликация,
редупликация, БП размножение. Она является главным критерием, отличающим
живые системы от неживых. Основной источник разнообразия при этой
программе - мутации. Вторая по важности программа жизни -
программа рекомбинации, которая лежит в основе таких биологических
явлений как кроссинговер, оплодотворение или сингамия. Создав
новый - внутренний, автономный от среды, источник разнообразия,
РЕК кардинальным образом решила проблему разнообразия. На ее основе
возник половой процесс. Третьей по важности программой можно
считать программу дифференциации, лежащую в основе явлений мейоза,
половой и других ДИФ. В результате этой программы появились РП формы,
касты у общественных насекомых, карликовые самцы у некоторых рыб
и другие ДИФ. В процессе эволюции эти программы, и все биологические
явления на их основе, возникли именно в таком порядке, отражающем
конститутивно-факультативные отношения между ними, когда предшествующие,
более основополагающие обязательны для существования последующих,
а наличие вторых - факультативно, не обязательно для первых.
Понятие пола включает два фундаментальных явления: половой
процесс (слияние генетической информации двух особей) и половую
дифференциацию (разделение этой информации на две части). В зависимости
от присутствия (+) или отсутствия (-) этих явлений, множество существующих
способов размножения можно разделить на три основные формы: (-,
-) - БП, (+, -) - ГФ и (+,+) - РП (табл.1).
Табл. 1. Характеристики трех основных способов
размножения
|
Способ размно-
жения
|
Программы (биол. явление)
|
Эффективность
|
Источн.
разнообразия
|
|
РЕП
(размно-жение)
|
РЕК
(половой процесс)
|
ДИФ
(половая
диффер.)
|
Количес-твенная
|
Ассорта-
тивная
|
Качест-
венная
|
|
БП
|
+
|
-
|
-
|
max
|
mid
|
min
|
M*
|
|
ГФ
|
+
|
+
|
-
|
mid
|
max
|
mid
|
M + P*
|
|
РП
|
+
|
+
|
+
|
min
|
mid
|
max
|
M+P+Д*
|
* М - мутации, Р - рекомбинации, Д - дифференциация.
Половой процесс и половая ДИФ явления разные и, по своей
сути, диаметрально противоположные. П процесс создает (повышает)
разнообразие генотипов и в этом его эволюционное предназначение.
П ДИФ, наоборот, снижает его вдвое и в чем её эволюционная роль
- никто не может объяснить. Так, в бесполой популяции, состоящей
из N особей, максимальное, теоретичеески возможное, разнообразие
генотипов потомства равно N, в том случае, если генотипы всех родителей
разные. Так как потомство каждой бесполой особи - клон с одинаковым
генотипом, то разнообразие потомства, s, может быть только меньше
N.
С появлением П процесса возможное разнообразие потомства
возводится в квадрат численности. При этом у ГФ каждая из N особей
может скрещиваться с N-1 особью (кроме себя), но поскольку
особь №1 с№2то же самое, что №2 с №1 (т.е.
нет реципрокного эффекта), то при N >>1, разнообразие: s =
N(N-1)/ 2 » N2/2 (при наличии реципрокных
различий s » N2). У РП форм, появление П ДИФ, наложив
запрет на однополые комбинации (мм, жж), минимум вдвое уменьшает,
возможное у ГФ разнообразие: s = N/2 ´ N/2 = N2/4
(каждая самка с каждым самцом, при одинаковой их численности N/2).
Разнообразие потомства в РП популяции зависит еще от СП в родительском
поколении: оно максимально при СП= 1:1, и уменьшается при
любом отклонении от этого значения.
Значит, при одинаковой численности N, максимально возможное
разнообразие потомства БП, ГФ и РП популяций относятся друг к другу
соответственно, как: N : N2/2 : N2/4,
т.е. при переходе от ГФ к РП утрачивается минимум половина разнообразия!
Тогда, совершенно непонятно - что дает ДИФ, если она ухудшает вдвое
основное достижение П размножения? Почему все прогрессивные в эволюционном
плане виды животных: млекопитающие, птицы, насекомые, и растений
(двудомные) - РП, в то время, как явные преимущества количественной
эффективности и простоты у БП, а разнообразия потомства - у ГФ?
В этом суть загадки пола, которую не могут решить. Это объясняется
прежде всего тем, что нет четкого понимания, что П процесс и П ДИФ
противоположные явления. Пытаются понять преимущества П размножения
(ГФ+РП) перед БП, в то время, как необходимо понять преимущества
РП, перед ГФ (см. табл. 1). Для чего П процесс - понятно: он источник
разнообразия. Необходимо объяснить - что дает ДИФ? И хотя уже поняли,
что, если у П способов нет явных преимуществ перед БП, то должны
быть существенные эволюционные преимущества23,
все равно проблему пола продолжают решать, как проблему размножения,
а не эволюции.
ИДЕЯ АСИНХРОННОЙ (ДИХРОННОЙ) ЭВОЛЮЦИИ
В рамках адаптогенеза Дарвина, эволюция системы следует
за изменением среды и идет методом проб и ошибок. Поэтому выгоднее
пробовать не на целой системе, а только на ее части. Для этого необходимо
разделить систему на две части: одну - основную, более ценную, убрать
подальше от среды, с тем, чтобы лучше сохранить прошлое, а вторую:
“экспериментальную”, менее ценную - выдвинуть поближе к среде, чтобы
“узнать”, что требуется в настоящем и как измениться в будущем.
Такая консервативно-оперативная специализация частей достигается
их последовательной (каскадной), дихронной (для бинарных систем)
эволюцией: все новые признаки появляются сначала в оперативной подсистеме
(у мужского пола), проходят там проверку, после чего - передаются
в консервативную (женскому полу)24.
В 1972 г. я обобщил эту идею для консервативно-оперативной
трактовки целого ряда бинарных эволюционирующих следящих систем
от молекулярного уровня организации до популяционного и социального:
ДНК-белки, А-ПХ, ядро-цитоплазма, женский-мужской пол, подкорка-кора
головного мозга и т.д. Была также высказана гипотеза о том, что
все ДИФ адаптивных систем можно рассматривать, как оперативно-консервативные
специализации, определяющие последовательность попадания информации
от среды в подсистемы25.
На такой базе были созданы изоморфные теории дихронной эволюции
полов (ТДЭП)26,
асимметрии организмов и мозга27,
обладающие исключительным для биологических теорий объяснительным
и предсказательным потенциалом28.
Позже была сделана попытка распространить эту идеологию на А-Г ДИФ
генома29.
Делится ли РП популяция на женский - мужской пол, билатеральный
организм, мозг или др. парные органы на левую - правую половины,
общество на правшей - левшей, геном на А - ПХ, или ПХ на Х- и Y-хр,
все эти ДИФ зиждутся на одном и том же, главном для эволюционирующих
систем, принципе специализации: по сохранению (С) и изменению
(И) системы. Во-первых, наличие С и И - два главных условия
эволюции. Если одно из них отсутствует, то нет эволюции: система
либо исчезает, либо стабильна. Во-вторых, их соотношение, И/С, характеризует
эволюционную пластичность системы. В-третьих, эти условия альтернативны:
чем больше И, тем меньше С, и наоборот, т.к. они дополняют друг
друга до единицы: С + И = 1. Поэтому без специализации
подсистем, системе приходится выбирать некий компромиссный оптимум
И/C, в то время, как при их дополняющей друг друга специализации
возможно увеличить одновременно и то и другое. Скажем, при изогамии
каждая гамета выполняет и консервативную (обеспечение зиготы ресурсами)
и оперативную (поиск партнера) функции. Имея одинаковые средние
(с) размеры, изогаметы и то и другое делают посредственно. Дифференциация
по размеру позволяет мелким (м) лучше осуществлять поиск,
а крупным (к) - обеспечение ресурсами, тогда сочетание к-м
выгоднее чем с-с. В этом эволюционное преимущество ДИФ.
В каждой из приведенных выше пар первая подсистема
консервативная, главная, удаленная и защищенная от среды, вторая
- оперативная “экспериментальная”, теснее связанная со средой. Поэтому
управляющая информация от среды попадает сначала в оперативную подсистему,
оттуда в консервативную. Это приводит к тому, что эволюция любого
признака происходит в них дихронно (асинхронно): у оперативных
она и начинается, и кончается раньше, чем у консервативных.
Следовательно, согласно теории, новые признаки появляются
сначала у мужского пола, потом (спустя много поколений) передаются
женскому30; новые
функции являются ведущими, сначала на правой стороне тела, потом
- на левой; доминирующие центры управления ими возникают сначала
в левом полушарии мозга, потом транслоцируют в правое31.
Точно так же, новые гены должны появляться прежде в половых хромосомах,
потом, в аутосомах32.
ТДЭП. Появление дихронизма
и фазы эволюции признака.
Половая ДИФ - экономная форма информационного контакта
РП популяции со средой, позволяющая, благодаря дихронной эволюциии,
все новые признаки проверять у мужского пола, прежде чем передавать
их женскому (рис. 1, 2).
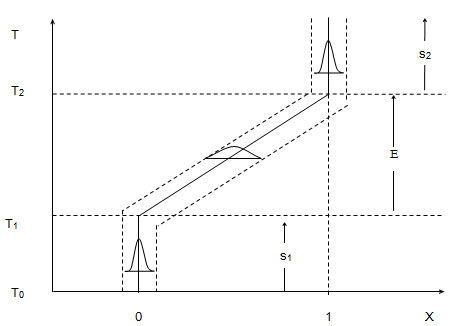
Рисунок 1. Эволюция признака (0–1) у нераздельнополых
форм
По оси абсцисс: `Х - среднепопуляционный генотип по
данному признаку, 0 - до эволюции, 1 - после
эволюции. По оси ординат: Т - время в филогенетическом
масштабе, Т1 - начало, Т2
- конец эволюции признака. Э - стадия эволюции
признака, с1 - доэволюционная,
с2 - послеэволюционная фаза
стабильной стадии признака. Пунктирные линии, параллельные траектории
и маленькие кривые распределения между ними, показывают величину
дисперсии генотипов в популяции в разных фазах.
Мужской и женский пол по разному реагируют на изменения
среды, в частности, появление экологического дифференциала. В 1974
г. мной была выдвинута гипотеза о более широкой норме реакции женского
пола, по сравнению с мужским, позволившая успешно предсказать большую
конкордантность мужских пар монозиготных близнецов и женских пар
- дизиготных33.
Более широкая норма реакции женских особей позволяет им, на
базе старого генотипа, только за счет онтогенетической пластичности
создать более адаптивный фенотип и покинуть зону отбора. Узкая норма
реакции мужских особей такой возможности не дает. Это приводит к
тому, что отбор действует в основном на мужской пол: падает его
численность и меняется распределение генотипов, т.е. начинается
эволюция. Значит одна и та же информация от среды модифицирует женский
пол и элиминирует - мужской. Иными словами, ПД по норме реакции
обеспечивает повышенную фенотипическую пластичность женскому полу
в онтогенезе, и - генотипическую пластичность мужскому полу в филогенезе,
т.е. опережающую эволюцию34.
Значит, женский пол преобразует экологическую информацию во временный
фенотипический ПД, а мужской пол - заплатив за нее своей численностью
- в ГПД, с тем, чтобы после проверки передать её женскому полу “бескровным”
внутренним путем. Стало быть ГПД становится для женского пола движущим
потенциалом, вместо экологического дифференциала, позволяющим ему
новую информацию получать не от среды, а от мужского пола, минуя
отбор. В этом эволюционный смысл половой ДИФ и главное
преимущество РП.
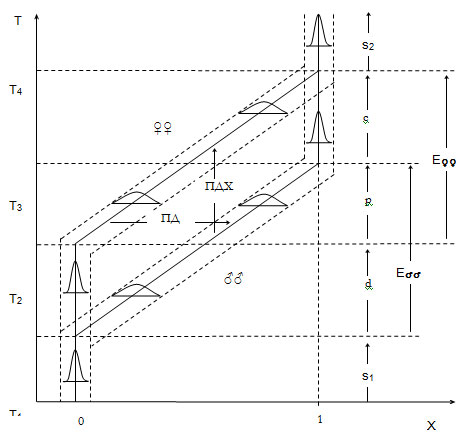
Рисунок 2. Асинхронная эволюция признака (0 – 1)
у мужского (♂♂) и женского (♀♀) пола
Т1 —начало, Т3
—конец эволюции признака у мужского пола. Т2
- начало, Т4 - конец эволюции признака
у женского пола. д - дивергентная, п - параллельная,
к — конвергентная фазы эволюции. Э♂♂
- эволюция признака у мужского пола. Э♀♀
- эволюция признака у женского пола. ПДМ - половой
диморфизм, ПДХ - половой дихронизм. Остальные обозначения
те же, что и на рис. 1.
Эволюция любого признака у РП форм, согласно теории,
включает три фазы.
В первой, дивергентной фазе эволюционирует только мужской
пол, т.к. новая информация от среды попадает только к нему.
Появляется ГПД, который растет из поколения в поколение (фаза роста
ГПД). Длительность дивергентной фазы, величина асинхронии, или П
дихронизм, равна отставанию женского пола, или опережению - мужского
(рис. 2). Эта временна¢я “дистанция” необходима для проверки
новых признаков у мужского пола. Но дивергенция полов не может
продолжаться бесконечно, т.к. иначе наступит репродуктивная изоляция.
Включается механизм оттока информации от мужского пола
к женскому. Начинает изменяться женский пол. Это вторая фаза
эволюции признака - параллельная, когда эволюционируют с одинаковой
скоростью оба пола. Устанавливается стационарный режим для
ГПД, который остается постоянным до конца фазы.
Третья фаза эволюции - конвергентная, в ней эволюционирует
только женский пол. Начинается она, когда на мужской пол перестает
действовать экологический дифференциал, а на женский пол продолжает
действовать ГПД. Происходит уменьшение и утрата (релаксация)
ГПД. Диморфный в процессе эволюции признак становится
снова мономорфным и стабильным. На этом эволюция
признака кончается. Это значит, что РП, которую мы привыкли считать
эффективным способом размножения, скорее - эффективный способ эволюции35.
Поэтому естественно, что новая трактовка коренного понятия - пола
(ДИФ) позволяет, соответственно, по-новому трактовать и все производные
от него понятия: ПД, СП, ПХ, половых гормонов и др., которые также
приобретают эволюционный смысл.
Половой диморфизм
Едва ли не единственное объяснение возникновения ПД
- теория полового отбора Дарвина36.
Но, объяснив общее явление ПД как следствие частного механизма полового
отбора, Дарвин допустил методологическую ошибку. Трактующая теория
всегда должна быть шире трактуемого явления. В этом причина
слабости теории полового отбора. Она не могла объяснить существование
ПД у растений, у которых нет полового отбора, у животных по признакам,
не имеющим отношения к половому отбору, ничего не могла предсказывать37.
Согласно теории, ГПД - следствие дихронной эволюции
полов, поэтому может быть только по эволюционирующим признакам.
Он возникает всегда при эволюции любого признака, как “дистанция”
между полами при любом отборе: естественном, половом, искусственном.
При этом вектор ГПД (от женской формы признака к мужской) показывает
направление эволюции этого признака.
Если новая информация (Iн) уже попала к мужскому
полу (“карантин”), но еще не попала к женскому, или старая информация
(Ic) уже утрачена мужским полом, но еще сохраняется у
женского (“архив”), их сумма и составляет ГПД. Следовательно информация,
содержащаяся в мужском геноме: Iм = Io +
Iн , а в женском: Iж = Io +
Ic , где: Io - общая информация, присутствующая
и там и там (в том числе и о первичных половых признаках обоих полов).
Отметим, что при смешении двух популяций (видов, рас, этносов),
общая информация перемешивается в первом же поколении, а новая
и старая - остаются обособленными на время полового дихронизма.
Такое представление легко объясняет, в частности, различия
межвидовых, межрасовых или межнациональных реципрокных гибридов,
связанные с направлением скрещивания, т.к. у реципрокных гибридов
одинакова только общая часть информации, а Iн и Ic
они получают от разных форм (например, мул и лошак).
Если бы потомки от отца и матери получали одинаковую генетическую
информацию, то не должно было быть никаких реципрокных эффектов.
ТДЭП позволяет делать целый ряд успешных, легко проверяемых,
предсказаний, естественно и просто объясняет с единых позиций
множество, непонятных ранее, явлений и фактов. Например, эволюция
большинства видов позвоночных сопровождалась укрупнением размеров,
а многие виды насекомых и паукообразных, наоборот - мельчали. Стало
быть, согласно теории, самцы должны быть крупнее самок чаще у крупных
позвоночных, а мельче самок - у мелких форм насекомых и паукообразных.
Это так и есть. Та же тенденция наблюдается и в классе млекопитающих,
и в отряде приматов и в других таксонах.
Подтверждает теорию также продвинутость мужского пола,
по сравнению с женским по всем селекционным признакам у культурных
растений и животных. Самцы дают намного больше мяса и лучшего качества,
чем самки, у них выше оплата корма и динамика роста. В тонкорунном
овцеводстве, пушном звероводстве, коневодстве, оленеводстве, шелководстве
и в производстве конопли мужские особи превосходят женских по всем
селекционным качествам.
По признакам же, присущим фенотипу только одного пола,
теорию можно проверить по реципрокным эффектам, поскольку она предсказывает
наличие “отцовского эффекта” (доминирование отцовской породы)
у реципрокных гибридов по всем дивергентно-эволюционирующим, признакам,
в том числе и чисто женским, и материнского эффекта по конвергентно-эволюционирующим38.
Отцовский эффект установлен по инстинкту насиживания, скороспелости,
яйценоскости и живому весу у кур, по динамике роста, числу позвонков
и длине тонкого кишечника у свиней, по удою молока и продукции молочного
жира у крупного рогатого скота39,
по алкоголизму у человека40
и др. Все эти признаки явно новые, ибо являются результатом селекции
или социальных причин. Наличие отцовского эффекта по удою и яйценоскости
означает не что иное, как более высокую генотипическую “удойность”
у быков и “яйценоскость” у петухов, чем у коров и кур, тех же пород.
Представления ТДЭП об обособленности новой и старой
информации на протяжении многих поколений, с учетом исторических
процессов смешения этносов, таких как: переселения (участвуют оба
пола от обоих этносов), завоевания (завоеватели - мужчины, а в покоренном
этносе - оба пола), депортация женщин завоеванного этноса к себе
на родину (2 женских этноса, 1 мужской) и т.д., позволяют объяснить
и другую группу непонятных явлений - в антропологии.
О.М.Павловский в туркменской популяции методом обобщенного
портрета, обнаружил четкий ПД: женские портреты укладывались в один
тип, мужские - только в два типа41.
Аналогичное явление открыл Р.М. Юсупов в краниологии башкир: мономодальное
распределение признаков женских черепов и тетрамодальное - мужских42.
Н.А. Долинова и Л.Г. Кавгазова, соответственно, в удмуртской
и болгарской популяциях, обнаружили ПД по дерматоглифике, когда
у женщин форма одного соседнего этноса, у мужчин - другого43.
Ни одна из существующих теорий, кроме ТДЭП, эти факты не может объяснить.
АУТОСОМНО-ГОНОСОМНАЯ ДИФФЕРЕНЦИАЦИЯ ГЕНОМА
Когда в 1965 г. идея дихронной эволюции впервые была
использована мной для решения проблемы пола, я понял, что она лежит
и в основе аутосомно-гоносомной дифференциации генома, и в заключение
статьи писал: “в хромосомном наборе ПХ выполняют роль оперативной
памяти, а А- постоянной, поэтому ПХ (в первую очередь Y-хр) являются
“воротами” для изменчивости в наследственность”44.
Сейчас это |